jeudi 14 juin 2012

Les crocodiles ont-ils chaud au cœur?


Avant-propos: Alors que je rédigeais le présent message sur les crocodiliens je suis tombé sur un article du blog de M. Colin qui traitait de thématiques similaires à l'article que j'étais alors en train de rédigé. Aussi histoire de ne pas répéter ce qui a déjà été très bien expliqué par Colin, je cite certains de son article tout en mettant bien évidemment ce dernier en lien. Lisez bien son article car il y a des détails sur le métabolisme des crocodiliens qui ne sont pas mentionnés ici.

Edit: Suite à un échange sur le forum de Rationalisme.org j'ai amené quelques corrections précisions à mon présent article sur les crocodiliens. Le gros des ajouts concerne la position et le développement de l'arc aortique gauche des crocodiliens. Merci à la personne qui a souligné les erreurs/omissions de mon présent message et m'a donc permis de combler ces dernières.
_________________________________

Le titre du présent article peut sembler quelque peu fantaisiste mais avant d’expliquer de quoi il s’agit petit rappelle sur la phylogénie des crocodiliens.

Les crocodiliens sont des Archosauriens, les Archosauriens étaient jadis représentés par divers taxons, tels que les Ptérosaures et les multiples lignées de Dinosaures aujourd’hui disparues (voir l'arbre phylogénétique ci-dessous) et bien plus encore. Aujourd’hui subsistent deux importants taxons d’Archosauriens, à savoir les Dinosaures Aviens (Oiseaux) et les crocodiliens.

Phylogénie des amniotes.

Les crocodiliens d’aujourd’hui sont représentés par des taxons tels que les alligators, les gavials et bien évidemment les crocodiles à proprement parler.


De gauche à droite, un gavial, un alligator et un crocodile.

Les crocodiles sont donc des Archosauriens et sont donc plus proches des oiseaux que des autres «reptiles». Et petite précision par «autres reptiles» nous entendons bien évidemment les Lépidosauriens + les Testudines (c'est-à-dire les Tortues dont la position phylogénétique exacte parmi les amniotes demeure incertaine). D'ailleurs si l'on observe la phylogénie des amniotes ci-dessus on s'aperçoit que le terme «reptile» n'a donc pas de réelle pertinence car au mieux paraphylétique (voir aussi cet extrait du documentaire «Espèce d'Espèce»)! Certes ça beaucoup d’entre vous le savaient probablement déjà mais gardez bien cela en tête car cela est à mettre en lien avec ce qui va suivre.

Cœur de crocodile

Bon attaquons tout de suite la thématique figurant dans le titre du présent article à savoir le cœur des Crocodiliens. Pour se faire comparons schématiquement le cœur d’un Crocodilien avec celui d’un oiseau (ou d’un mammifère) ainsi qu’avec celui d’un «reptile» ou mieux dit celui d'un Lépidosaurien et/ou d'une Tortue (voir schéma ci-dessous).


Chez les mammifères et les oiseaux (a) nous avons quatre cavités, les deux cavité de droites sont parfaitement séparés de celles de gauche. Le sang désoxygéné (et riche en CO2) sort de la cavité de l’oreillette droite vers l’artère pulmonaire pour rejoindre les poumons. Le sang oxygéné est propulsée hors de l’oreillette gauche vers le corps via une aorte unique. Chez les Lépidosauriens (lézards et serpent) et les tortues (b), la partie gauche et droite du cœur ne sont pas parfaitement séparées et donc sang oxygéné et désoxygéné se mélangent dans le cœur. Autre particularité nous avons cette fois-ci deux aortes que le sang ainsi mélangé peut «emprunter» avant d’irriguer le corps une aorte gauche et une aorte droite. Chez les crocodiliens (c) c’est encore plus compliqué, à l’instar des autres reptiles nous avons deux aortes (une aorte gauche partant de l’oreillette droite et une aorte droite partant de l’oreillette gauche) mais à l’instar des oiseaux et des mammifères nous avons un cœur à quatre cavités avec séparation totale des cavités gauche et droite. Néanmoins les sangs oxygéné et non-oxygéné peuvent se mélanger à l’extérieur du cœur via un passage reliant l’aorte gauche à l’aorte droite, ce passage se nommant le Foramen de Panizza.

Schéma du cœur de crocodilien. Nous noterons deux caractéristiques importante, premièrement le Foramen de Panizza déjà mentionné précédemment et reliant l’aorte gauche (LAo) à l’aorte droite (Rao) nous noterons qu’il est précisé sur le présent schéma que l’aorte droite se divise en d’autres vaisseaux (RS et CCA). Concernant l'aorte gauche (LAo) notons qu'elle prend départ à partir la partie droite du cœur. L’autre caractéristique majeure est la valve dentée (Cog-teeth-like valves) situé devant l’artère pulmonaire (artère pulmonaire qui se divise en deux, la droite et la gauche à savoir respectivement RPA et LPA sur le présent schéma).

Ouf vous avez tout suivit? Si c’est le cas alors jusque-là tout va bien mais attendez ce n’est pas tout puisque grâce notamment à la valve dentée et au Foramen de Panizza mentionnées ci-dessus, les crocodiliens sont en fait capables de changer leur mode de circulation sanguine! Hein quoi? Qu’est-ce que cela veut dire? L’extrait de l'article du Blog de M. Colin suivit d’une image, devrait éclairer tout le monde sur la question.

En temps normal la base de l’aorte gauche est fermée et celle-ci reçoit du sang oxygéné en provenance du ventricule gauche via le foramen de Panizza. Dans cette situation l’apport en dioxygène au reste de l’organisme est maximal.Mais lorsque l’animal est en plongée (et lorsqu’il digère), le sang désoxygéné du ventricule droit passe dans les aortes droites et gauche (via le foramen). Les poumons ne servant à rien sous l’eau leur irrigation sanguine diminue donc de façon automatique par constriction de l’artère pulmonaire (au niveau de la valve dentée). En première approximation l'ouverture de l'aorte gauche permet simplement de diminuer la résistance à l’écoulement du sang. M. Collin

Vous l’avez compris le mode normal correspond à l’image de gauche où sang oxygéné et sang désoxygéné ne se mélangent pas. Le mode alternatif (lorsque le crocodile digère et/ou est en plongé) correspond à l’image de droite.

Ouf voilà qui fout un coup n’est-il pas? Comme M. Colin nous venons de prendre conscience que notre cœur est bien moins performant et complexe que celui du crocodile! Mais peut-être pensez-vous que les révélations étonnantes s’arrêtent-là? Que nenni! Il nous reste à déterminer comment les crocodiliens ont pu acquérir un cœur aussi épatant!

Cœur de crocodile versus…..cœur de «reptile»!

En fin 2004 une équipe de chercheurs (Roger S. Seymour et al (2004) [1] publièrent une étude susceptible d’apporter des éclaircissements quant aux modalités d’évolution des caractéristiques si particulières du cœur des crocodiliens. Leur étude se basait sur diverses observations du développement ontogénique du cœur des crocodiliens ainsi que de celui d’autres «reptiles» c'est-à-dire de Lépidosauriens et de Tortues. Le but de pareilles observations étant notamment de déterminer à quels stades sur développement apparaissent les particularités crocodiliennes.
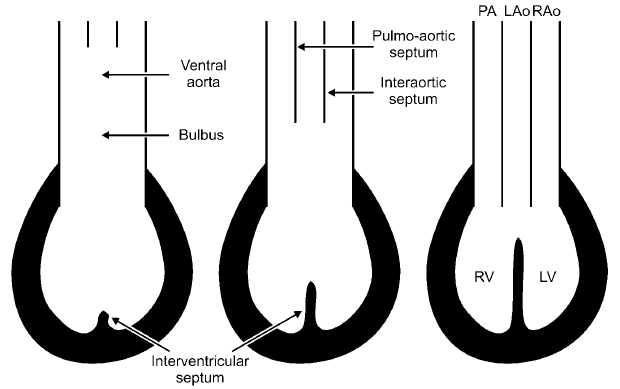
Schéma simplifié du développement ontogénique du cœur des reptiles. Chez les Lépidosauriens et les Tortues le septum interventriculaire ne se développe pas jusqu’à séparer entièrement la partie gauche de la partie droite du cœur où se mélange donc les sangs oxygéné et désoxygéné. Nous noterons cependant qu’à l’instar des Crocodiliens nous avons deux aortes, l’aorte gauche et l’aorte droite les deux aortes étant séparées par un septum inter-aortique.

Chez les crocodiliens cependant le cœur a sa partie gauche totalement séparée de la partie droite par un septum membraneux «prolongeant» le septum interventriculaire comme le montre le schéma ci-dessus. Nous noterons également le fait que l'aorte gauche part du ventricule droit du cœur. Mais l'aorte gauche est également relié à l'aorte droite (qui elle part de la partie gauche du cœur) via le Foramen de Panizza.

Ainsi contrairement aux autres «reptile» mais à l’instar des oiseaux le cœur des crocodiliens possède quatre cavités avec une séparation totale des cavités gauches de celles de droites. Ces observations tendant à indiquer que les premiers Archosauriens, parmi lesquels les ancêtres communs des oiseaux et des crocodiliens, avaient eux aussi un cœur dont les parties droite et gauche étaient entièrement séparées l’une de l’autre empêchant ainsi les sangs oxygéné et non-oxygéné de se mélanger dans leur cœur comme cela est pourtant le cas chez les autres «reptiles». Et cela confirmant par ailleurs le caractère désuet car non-monophylétique de la catégorie «reptiles». Cependant comme nous l’avons vu plus haut chez les crocodiliens les sangs oxygéné et désoxygéné peuvent se mélanger grâce notamment au Foramen de Panizza (celui-ci reliant l’aorte gauche à l’aorte droite) ainsi qu’à la valve dentée. La question qui se pose est de savoir comment les crocodiliens ont put acquérir un cœur aussi élaboré au cours de leur évolution.

L'étrange position de l'aorte gauche

L'aorte gauche des crocodiliens est également une curiosité puisqu'elle est relié non pas au ventricule gauche (d'où part le sang oxygéné) mais au ventricule droit (d'où part le sang désoxygéné). Ce positionnement de l'arc aortique gauche étant indispensable pour permettre aux sangs oxygéné et désoxygéné de se mélanger chez les crocodiliens. Or si l'on observe le schéma précédent on remarque que si l'arc aortique gauche part du ventricule droit cela dépend de la position du septum membraneux par apport aux trois arc aortique (arcs aortique gauche et droites ainsi que l'arc aortique pulmonaire). Seymour et al continuant leurs explications en précisant que la position des trois arcs aortiques à la sortie du cœur (qui définira en bonne parti le «mode» de circulation) dépend donc du développement ontogénique du septum membranaire!

En effet comme le souligne Seymour et al durant son développement chez les crocodiliens, le septum membranaire se développe et «s'attache» entre l'arc aortique gauche et l'arc aortique droite. Avec la conséquence que l'on connait à savoir une aorte gauche partant du ventricule droit.

Durant son développement chez les oiseaux le septum membraneux se développe et «s'attache» entre l'arc aortique gauche et l'arc aortique pulmonaire. Donc chez les oiseaux l'aorte gauche devrait prendre racine dans le ventricule gauche (Seymour et al notent toutefois quelques anomalies ponctuelles où l'arc gauche se serait malgré tout «attachée» au ventricule droit chez certains embryons d'oiseaux) . Mais attendez! Durant la suite de leur développement l'arc aortique gauche des oiseaux s'atrophie rapidement pour ne laisser place qu'au seul arc aortique droit! Et donc notons à titre de comparaison et contrairement à ce que pourrait laisser supposer ce précédent schéma, que la situation diffère de manière importante chez les mammifères, puisque chez ces derniers l'aorte qui subsiste est l'aorte gauche, là où les oiseaux retiennent donc l'aorte droite! Cela étant parfaitement logique sachant que les oiseaux sont des archosauriens tout comme les crocodiliens avec lesquels ils partagent donc l'aorte droite!

Mais quel est l'intérêt de cette comparaison crocodiliens/oiseaux? Simple sachant que durant leur développement les embryons d'oiseaux présentent un arc aortique droit «prenant racine» dans le ventricule gauche Seymour et al notent que nous pouvons assez aisément nous représenter l'évolution du cœur des crocodiliens et de celui des oiseaux à partir de celui ancêtre commun. Seymour et al ajoutant que la position de l'arc aortique gauche prenant racine dans le ventricule droit chez les crocodiliens pouvant s'expliquer par un simple «déplacement» («shift» en anglais) du septum membranaire. Pareil déplacement pouvant se faire en une fois (c'est-à-dire en une génération) Seymour et al rappelant que pareil «déplacement» du septum membraneux se produit parfois y compris chez les mammifères avec cependant-là des conséquences généralement fâcheuses pour l'animal.

Le Foramen de Panizza est-il plésiomorphe ou apomorphe?

La question qui se pose ensuite est «l’origine évolutive» d'une autre caractéristique propre au cœur des crocodiliens à savoir le Foramen de Panizza. Ainsi par exemple dans son blog Jean-Philippe Colin souligne une théorie voulant que le Foramen de Panizza soit plésiomorphe c’est-à-dire un caractère ancestral présent chez les premiers Archosauriens.

Pour beaucoup, cette petite communication [le Foramen de Panizza] est un caractère ancestral conservé (plésiomorphe) qui n’est pas adaptatif, en gros « c’est comme ça, c’était déjà là, et ça sert à rien… ». Les seuls organismes dont le cœur est parfaitement cloisonné étant des animaux à sang chaud ou "homéothermes" (mammifères et oiseaux). M. Colin

L’hypothèse selon laquelle le Foramen de Panizza serait un caractère plésiomorphe est tout à fait crédible et signifierait que les premiers Archosauriens (parmi lesquels les ancêtres communs des crocodiles et des oiseaux) voyaient probablement déjà leurs sangs oxygéné et désoxygéné se mélanger. Mais c’est justement-là un point que «conteste» l’étude de Seymour et al en se basant sur les modalités de développement du cœur des crocodiliens. En effet certains se souviendront peut-être ici en quoi la biologie du développement nous renseigne sur l’évolution des animaux, au point que l’on parle souvent d’évo-dévo. Sans réexpliquer ici toutes les subtilités qui entourent la notion d’évo-dévo, rappelons simplement que généralement (mais pas toujours) les caractéristiques anatomiques qui apparaissent tôt durant le développement d’un organisme sont celles qui sont les plus anciennes (donc que possédaient déjà les lointains ancêtres de l’organisme) à l’inverse un caractère qui apparait tardivement durant le développement est davantage susceptible d’être un caractère apparu récemment dans l’histoire évolutive de l’organisme en question. Mais attention de ne pas tomber dans le piège d’un récapitulationnisme naïf voulant que l’ontogenèse récapitule parfaitement la phylogenèse. Souvenons-nous du modèle de développement en sablier [2] ainsi que des cas de Néoténie. Ces précisions en étant faites voyons ce que nous avons à apprendre sur le développement et l’évolution du Foramen de Panizza.

Dans leur étude Seymour et al relatent tout d’abord les thèses de certains chercheurs tels que Goodrich (1958) qui pensaient que le Foramen de Panizza apparaissait simplement parce que durant le développement du cœur des crocodiliens, le septum inter-aortique séparent l’aorte gauche de l’aorte droite, se développerait de manière incomplète laissant donc une «ouverture» entre les deux arcs aortiques, ouverture qui serait donc le Foramen de Panizza. Cette théorie est compatible avec l’idée que le Foramen de Panizza est un caractère «primitif» c’est-à-dire plésiomorphe. Cependant Seymour et al soulignent que même si Goodrich avait raison cela ne s’opposerait non-plus pas à l’idée selon laquelle le Foramen de Panizza serait un caractère dérivé, le développement incomplet du septum inter-aortique pouvant être perçu comme un caractère néoténique secondairement acquis au cours de l’évolution des crocodiliens.

Mais finalement Roger S. Seymour et al relatent des observations qui ne collent pas avec la théorie de Goodrich. En effet les observations en question soulignent que le Foramen de Panizza apparait après que le septum inter-aortique se soit formé. Cela tend à appuyer l’idée selon laquelle le Foramen de Panizza serait un caractère «dérivé», c’est-à-dire une innovation évolutive propre aux crocodiliens et non pas un caractère «primitif» déjà présent chez les premiers Archosauriens et dont auraient hérité les crocodiliens actuels.

Coupes de cœurs de crocodiliens à différents stades du développement (du stade 21 au stade 27). Nous remarquons au stade 21 que l’arc aortique gauche est entièrement séparée de l’arc aortique droite. Le Foramen de Panizza («FP» sur les présentes images) se développe ensuite à partir d’une «fossette» («dimple» sur les présentes images) se creusant entre les deux arcs aortiques et finissant par relier ces dernières à partir du stage 24 et continuant de s’élargir par la suite. Le Foramen de Panizza n’étant donc pas le fruit d'un développement incomplet du septum inter-aortique car apparaissant après que celui-ci se soit déjà établi!

Et la valve dentée?

Oui la valve dentée, un peu plus et on l’oubliait cette petit coquine! Rappelons-nous que la valve dentée est l'une des caractéristiques du cœur des crocodiliens qui permet de «switcher» leur circulation sanguine.

Que nous apprennent Seymour et al concernant la valve dentée? Concernant celle-ci les observations sont même des plus révélatrices que celles concernant le Foramen de Panizza puisque durant tout le développement et même à l’éclosion les crocodiliens analysés n’avaient pas de valves dentées pleinement formées et fonctionnelles. En réalité la valve dentée termine de se développer après la naissance de l’animal et elle ne sera pleinement fonctionnelle qu’une fois son développement terminé. Cela indiquant que la valve dentée est probablement elle aussi un caractère dérivé acquis tardivement durant l’évolution des crocodiliens!

Bien évidemment une personne avisée en biologie de l’évolution peut rappeler la nécessaire prudence à avoir face à ces observations en rappelant que l’ontogenèse ne récapitule pas (parfaitement) la phylogenèse. Néanmoins ces observations constituent indéniablement des éléments en faveur d’une origine «tardive» du Foramen de Panizza et de la valve dentée. Cela renforçant une autre hypothèse à savoir celle voulant que les premiers Archosauriens, parmi lesquels les ancêtres communs des crocodiliens et des oiseaux, possédaient déjà un cœur cloisonné entre sa partie gauche et sa partie droite et que donc les sangs oxygéné et non-oxygéné ne se mélangeaient pas. Ainsi la capacité des crocodiliens de «switcher» leur circulation sanguine donc de mélanger leurs sangs oxygéné et non-oxygéné serait un caractère dérivé c’est-à-dire une apomorphie!

Seymour et al soulignant qu’il est alors fort probable que les premiers Archosauriens étaient des animaux où pareil mélange des sangs oxygéné et non-oxygéné n’avaient pas lieu et que donc les premiers Archosauriens auraient été homéothermes. Cela impliquerait alors que le métabolisme ectotherme des crocodiliens actuels représenterait lui aussi un caractère «dérivé» acquis par les crocodiliens au cours de leur évolution.

Or tout cela implique que les ancêtres des crocodiliens étaient peut-être à sang chaud! Pourquoi? Simplement parce qu’il est donc fort probable que les ancêtres des crocodiliens avaient déjà un cœur dont les cavité gauches sont totalement séparées de celles de droites, mais n'avaient donc pas ni de Foramen de Panizza, ni d'aorte gauche partant du ventriculaire droit, ni valve dentée. Cela impliquant que les dits ancêtres ne pouvaient donc probablement pas mélanger le sang oxygéné au sang désoxygéné. Or ce non-mélange est généralement associé à l’homéothermie. [3] Roger S. Seymour et al soulignent que ce scénario a rarement été considéré dans le passé en raison d’une certaine préconception voulant que les homéothermes, vues à tort comme étant plus « évolués», dérivent des ectothermes et non l’inverse. Mais donc contrairement à cette préconception Roger S. Seymour et al  rappelle que des cas d’évolution dans «l’autre sens» ont dû exister et existent, les crocodiliens n’en seraient donc qu’un exemple parmi d’autres.

Et ce n’est pas tout!

Notons que le cœur exceptionnel des crocodiliens ainsi que les modalités de développement de celui-ci ne sont pas les seuls indices en faveur d’ancêtres Archosauriens homéothermes. Par exemple saviez-vous que le système respiratoire des crocodiliens est étrangement similaire à celui des oiseaux? [4]

Mieux encore le registre fossile nous amène de précieuses informations sur ce à quoi pouvaient ressembler les ancêtres des crocodiliens. En effet rappelons-nous que les crocodiliens ne sont qu’un rameau d’un taxon d’Archosauriens jadis bien plus diversifié et que l’on nomme les Crocodylomorpha. En effet les fossiles de ces anciens cousins de nos crocodiliens actuels tendent à montrer qu’ils avaient pour beaucoup un mode de vie terrestre et contrairement aux crocodiles actuels des membres bien redressés sous leur corps voir même pour certains, adoptaient une locomotion bipède [5]. Le positionnement de leurs membres et leur locomotion étaient en effet plus similaire à celui des dinosaures qu’à celui de nos crocodiliens actuels, tout cela étant compatible avec un mode de vie actif lui-même compatible avec l’homéothermie!

Schéma simplifié du «scénario évolutif» suggéré ici. Selon le scénario évolutif en question les premiers Archosauriens acquièrent (ou ont déjà acquis) un métabolisme homéotherme. Métabolisme homéothermes qui sera hérité par les dinosaures et les oiseaux. Cependant chez les crocodiliens l’homéothermie sera perdue au profit d’un métabolisme ectotherme et d’un système cardiovasculaire permettant de mélanger sangs oxygéné et désoxygéné. Notons que l’on ne peut non plus pas exclure que certains dinosaures (notamment les grand dinosaures sauropodes) n’aient pas eux aussi évoluer vers des métabolisme ectothermes, Seymour et al suggérant que le passage d’un métabolisme homéotherme à un métabolisme ectotherme a pu avoir lieu plusieurs fois durant l’évolution des Archosauriens ainsi que dans d’autres lignées d’amniotes.

Conclusion:

Même si il n’y a à ce jour aucune certitude, la prise en compte des liens de parentés réels des crocodiliens ainsi qu’une meilleure connaissance de leur biologie, nous oblige à considérer avec sérieux la théorie selon laquelle les ancêtres des crocodiliens actuels aient été homéothermes.

Ces nouvelles perspectives et théories sur l’évolution des crocodiliens en particulier et des Archosauriens en général, sont également là pour nous rappeler que l’homme et les autres mammifères avec leur homéothermie et leur cœur à quatre cavités ne sont pas le «summum» en matière d’évolution. Les crocodiliens ont un cœur bien plus «complexe» et «élaboré» que le nôtre et nous rappellent non seulement que nous ne sommes pas au sommet de l’échelle de l’évolution mais également que l’échelle de l’évolution n’existe tout simplement pas.

Références:

[1] Roger S. Seymour et al (2004), Evidence for Endothermic Ancestors of Crocodiles at the Stem of Archosaur Evolution, The University Chicago Press

[2] Naoki Irie & Shigeru Kuratani (2011), Comparative transcriptome analysis reveals vertebrate phylotypic period during organogenesis, Nature

[3] Adam P. Summers (2005), Evolution: Warm-hearted crocs, Nature

[4] K. T. Bates and E. R. Schachner (2011), Disparity and convergence in bipedal archosaur locomotion, Journal of The Royal Society

[5] C. G. Farmer and Kent Sanders (2010), Unidirectional Airflow in the Lungs of Alligators, Science

samedi 12 mai 2012

Probables thématiques à venir

J'aimerais tant avoir davantage de temps pour poster de bon gros messages consacrés aux sciences naturelles, hélas étant pour le moins débordé niveau travail il va encore falloir remettre tout cela à plus tard.

Néanmoins comme je l'avais mentionné dans l'avant-propos d'un de mes messages précédents, je compte prochainement discuté de nos amis les Crocodiliens. Dans un tout autre genre j'aimerais également abordé la question de l'anthropologie en revenant sur les différentes disciplines que recouvre ce terme, disciplines allant de l'anthropologie biologique à l'anthropologie culturelle et/ou l'anthropologie sociale en passant par l'archéologie et l'anthropologie linguistique. Mais il faudra encore voir comment aborder de manière concise ces différentes disciplines dans un seul et unique message!

En attendant ces futurs messages voici une petite vidéo présentant les résultat d'une importante étude scientifique qui devrait intéresser tout le monde. [1]


Vivement les vacances d'été!

Références:

[1] Doug Zongker (2007), Chicken Chicken Chicken: Chicken Chicken, University of Washington

samedi 7 avril 2012

Découverte d'un géant carnivore à «fourrure de plumes»


Reconstitution de Yutyrannus huali (qui sont ici les grand dinosaures au plumage brunâtre) dans un paysage enneigé. Nous devons cette magnifique illustration à un paléoartiste nommé Brian Choo. Notez qu'en bas à gauche de l'image le paléoartiste a également représenté deux représentants d'une autre espèce de dinosaure à plumes nommée Beipiaosaurus inexpectus. Cette dernière ayant été probablement contemporaine de Yutyrannus huali en plus d'avoir vécu dans la même région géographique.

Récemment un nouveau dinosaure à plumes nommé Yutyrannus huali  a été fait l'objet d'une description dans la prestigieuse revue «Nature» [1]. Yutyrannus huali combine deux caractéristiques qui réunies en font un spécimen de grand intérêt. la première est qu'il s'agit d'un grand dinosaure théropode carnivore, le deuxième est qu'il était recouvert, au moins en parti, de filament de plumes! Notons également que loin de n'être connu que via quelques ossements en mauvaises état, Yutyrannus huali l'est par trois squelette pratiquement complets!

 Crâne de Yutyrannus huali

 La probable position phylogénétique de Yutyrannus huali

Un grand dinosaure théropode carnivore recouverts de filament de plumes? Formidable, me direz-vous, mais à quelle grande famille de théropode appartient ce magnifique carnivore? Eh bien c'est là que cela devient intéressant, les auteur de la publication décrivant Yutyrannus huali, classent ce dernier dans la prestigieuse famille des Tyrannosauroidea dont le nom laisse entendre qu'il s'agit de celle comprenant le très célèbre Tyrannosaurus rex!

Phylogénétiquement Yutyrannus huali représenterait un genre basal du clade des Tyrannosauroidea.

Un représentant basale du clade de Tyrannosauroidea voilà qui a de quoi séduire. Cependant comme nous allons le voir ci-dessous un paléontologue appelle à la prudence sur ce dernier point.

Le paléontologue Darren Naish s'en mêle

Darren Naish est l'auteur du blog Tetrapod Zoology (blog figurant à la liste des mes favoris) mais c'est aussi un paléontologiste des vertébrés ayant fait sa thèse de Doctorat sur les Tyrannosauroidea et mieux encore c'est également un des scientifiques qui a fait parti du comité de lecture de la publication décrivant Yutyrannus huali. Rien que cela!

 Darren Naish
Or Darren Naish à des choses très intéressantes à dire concernant Yutyrannus huali, en effet selon lui Yutyrannus huali possèderait des caractère qui le rapprocherait des Carcharodontosauria, c'est-à-dire de dinosaures tels qu'Allosaurus et non pas de Tyrannosaurus rex.

Mais donc si l'hypothèse proposée par de Darren Naish s'avérait vrai cela voudrait dire que Yutyrannus huali serait le premier dinosaure théropode non-Cœlurosauriens chez lequel aurait pu être établi de manière indiscutable la présence de filaments de plumes! En effet rappelons nous que les Cœlurosauriens représentent un grand clade de dinosaures théropodes comprenant les oiseaux. Or si la présence de plumes et/ou de filaments est aujourd'hui plus que documenté au sein de ce clade, y compris depuis plusieurs années déjà chez des Tyrannosauroidea, tel que Dilong paradoxus [2], il n'en est rien chez des clades de dinosaures davantage éloignés des oiseaux tels que celui des Carcharodontosauria!

Notons cependant que la présence de plumes chez les Carcharodontosauria a été soupçonné chez le dinosaure Concavenator corcovatus en raison d'étrange appendices osseux sur ces avant-bras rappelant ceux d'attache de plumes que l'on trouve chez les oiseaux [3]. Cependant là encore Darren Naish donna de bonne raison de douter de la présence de plumes chez Concavenator corcovatus et donc à ce jour la présence de plumes ou même de simples filaments de plumes chez les Carcharodontosauria demeure quelque chose d'hypothétique.

 Concavenator corcovatus, reconstitution du paléographiste Alain Bénéteau

De plus Darren Naish souligne bien que sa proposition selon laquelle Yutyrannus huali pourrait être un Carcharodontosauria et non pas un Tyrannosauroidea, demeure elle aussi purement hypothétique et que donc Yutyrannus huali pourrait très bel et bien être un Tyrannosauroidea. Tout au plus Darren Naish appelle à rester pour l'instant prudent sur la position phylogénétique attribué à Yutyrannus huali en espérant que de nouvelles études prenant en compte un nombre plus important de données permettrons de trancher. Mais donc à ce jour l'hypothèse la plus probable semble être que Yutyrannus huali est bel et bien un Tyrannosauroidea.

Un nouveau dinosaure non-Maniraptorien à plumes.

Mais que Yutyrannus huali ait été un Carcharodontosauria ou un Tyrannosauroidea une chose est sûr il n'est certainement pas un Maniraptorien!  Yutyrannus huali constitue donc un dinosaure non-Maninraptoriens à plumes supplémentaire. Mais pourquoi cela est-il important? Eh bien pour le comprendre rappelons qu'une poignée de scientifiques que l'on surnomme les BANDits (pour «Birds Are Not Dinosaurs») continuent de nier la présence de filaments de plumes chez les dinosaures théropodes non-Maniraptoriens. Les BANDits affirmant par exemple que les filaments observéa sur le fossile du non-Maniraptorien Sinosauropteryx prima seraient en fait des fibres de collagènes dégradés [4]. Or comme cela a déjà été discutée de façon détaillée dans ce précédent message cette idée ne tient pas. Et cela surtout lorsque l'on sait que des mélanosomes ont pu être décrit au sein des filaments de Sinosauropteryx prima [5].  Et donc pareille idée ne tient pas non plus pour Yutyrannus huali! En effet comme le rappelle le paléontologue Dave Hone (dont le blog  «Archosaur Musings» figure également à mes favoris soit-dit en passant), les filaments de Yutyrannus huali, hormis d'être d'une longueur remarquable, sont disposés de manière adéquate par-apport au squelette. C'est-à-dire que les dits filaments ont une position et une orientation conformes à celles d'authentiques filaments et non pas d'un quelconque artefact de type «fibres de collagène dégradés».

 Gros plan sur les filaments de plumes de Yutyrannus huali

Nous noterons cependant plusieurs inconnues concernant les filaments de plumes de Yutyrannus huali. Tout d'abord les auteurs de l'étude l'admettent eux-même, on ignore si Yutyrannus huali était entièrement recouvert de plumes ou non, en fait on ignore quelle était l'étendu de son plumage si l'on peut dire. Ensuite on ignore quelle était la fonction de son plumage. Une des hypothèse est que celui-ci devait avoir une fonction thermorégulatrice à l'instar de ce que l'on observe avec les poils des mammifères actuels. En effet la plupart des grand mammifères (éléphants, rhinocéros) vivant dans un climat chaud sont dépourvu de poils afin de favoriser une nécessaire déperdition de chaleur que leur corps massif ne facilite guère. Cependant comme le prouve le défunt Mammouth laineux, en climat froids de grands et massifs animaux peuvent être recouverts de poils. Or les filaments de plumes de Yutyrannus huali sont d'une longueur remarquable, à savoir environ douze centimètres. Cela poussant certains chercheurs à se demander si ce grand dinosaure carnivore n'était pas adapté à des climats froids. À ce titre notez que la reconstitution de en haut du présent message, le représente évoluant dans paysage enneigé. Malheureusement cette dernière hypothèse des plus intéressantes et des plus plausibles demeure à ce jour des plus incertaines.

Conclusion 

Yutyrannus huali représente une découverte importante car démontrant que les grands dinosaures carnivores pouvaient eux aussi être recouverts de plumes. La question que se posent déjà certains est de savoir si certains dinosaures théropodes géants tels que le célèbre Tyrannosaurus rex possédaient eux aussi des filaments de plumes, hypothèse plus que plausible! Sinon je recommande également l'excellent article de Brian Switek consacré à Yutyrannus huali. Eh oui ce dernier a déjà énormément fait parler de lui au sein de la blogosphère dinosaurienne!

Références:


[3] Francisco Ortega, Fernando Escaso & José L. Sanz (2010), A bizarre humped Carcharodontosauria (Theropoda) from the Lower Cretaceous of Spain, Nature

[4]  Theagarten Lingham-Soliar, Alan Feduccia & Xiaolin Wang (2007), A new Chinese specimen indicates that ‘protofeathers’ in the Early Cretaceous theropod dinosaur Sinosauropteryx are degraded collagen fibres, Proceedings of the Royal Society

vendredi 16 mars 2012

Le plumage iridescent de Microraptor

Avant-propos: Mon emploi du temps est pour le moins chargé (bon d'accord en fait je suis vraiment surchargé) aussi mes messages de ce printemps seront moins nombreux et plus courts. Néanmoins j'espère avoir le temps avant cet été de pouvoir traité d'un fascinant sujet concernant nos amis les Crocodiliens. Mais d'ici là revenons sur le sujet exprimé par le titre du présent message.
________________________________________

Vous vous souvenez peut-être du fameux dinosaure à plumes nommé Microraptor n'est-il pas? Eh bien voici que ce dernier fait partie des dinosaures à plumes dont la couleur du plumage a pu être reconstitué [1]. Le plumage de Microraptor semble avoir eu plumage noir iridescent avec des reflets bleutés.


Reconstitution de Microraptor vêtus d'un plumage noir iridescent. Le plumage du fossile de Microraptor analysé devait donc être similaire à celui du Quiscale Bronzé dont voici un photo en bas à droite de la présente image.

Après avoir reconstitué les couleurs du plumage d'Anchiornis et de Sinosauropteryx, Microraptor entre donc dans le prestigieux «club» des dinosaures à plumes dont les couleurs sont au moins partiellement connues. Vous noterez également le magnifique état de conservation du fossile dont les plumes ont été analysé.


Il n'est pas nécessaire de répéter encore et toujours à quel point l'image que nous nous faisions il n'y a encore pas si longtemps, des dinosaures a changé depuis. Tout comme il n'y a pas besoin de répéter à quel point il est fascinant de pouvoir connaître au moins en partie, la couleur de certains dinosaures. Cependant je me demande si certains paléo-artistes ne risquent pas d'être quelque peu frustrés car ne pouvant plus se laissé leur imagination déterminé la couleur des dinosaures qu'ils représentent dans leur magnifiques reconstitutions, rigueur scientifique oblige! Cependant que nos amis les paléo-artistes se rassurent Microraptor, comme Anchiornis et comme les autres dinosaures ainsi nommés, représentent en réalité des genres particuliers de dinosaures. Genres qui se subdivisaient peut-être (probablement) en plusieurs espèces dont la couleur du plumage pouvait variée d'une espèce à l'autre. Il suffit à ce titre d'observé la diversité en matière de couleur du plumage entre les espèces contemporaines d'oiseaux appartenant au même genre pour se faire une idée sur la question. Alors qui sait peut-être que la reconstitution de Microraptor ci-dessous demeure correct, même si ne correspondant pas aux couleurs du fossile récemment analysé.


En espérant que de nombreux autres dinosaures à plumes seront retrouvé et dont les couleurs seront elles aussi révélées.

Référence:

vendredi 10 février 2012

Comprendre les Haplogroupes du Chromosome Y

Avant Propos: Le présent message peut-être associé à ma précédente réponse aux fadaises qu’un racialiste a jugé bon de retranscrire sur son blog.

Que sont les haplogroupes du chromosome Y?

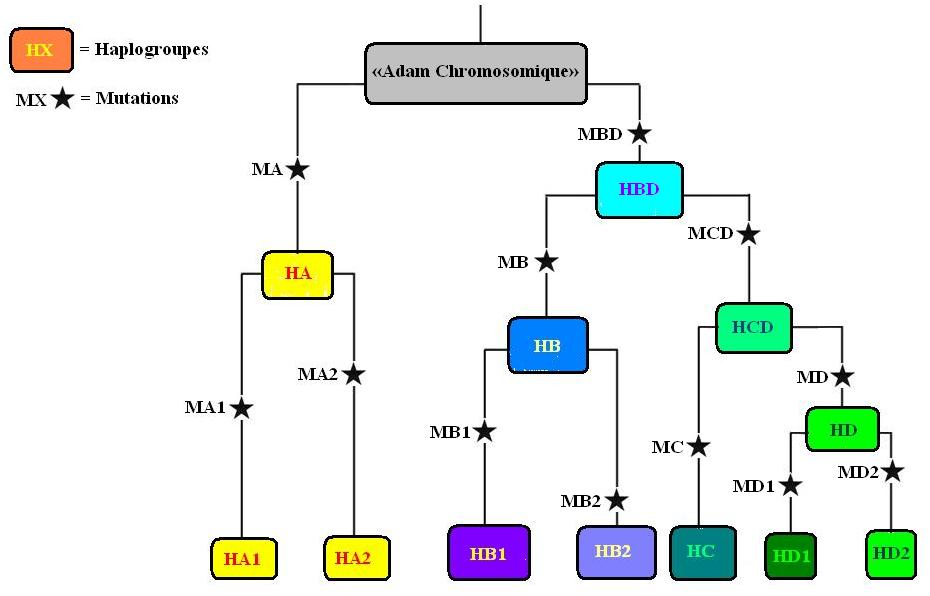
Les Haplogroupes du chromosome Y sont définit par une série d’allèles situés sur la partie non-recombinante du chromosome Y. Pourquoi la partie non-recombinante du chromosome Y? Justement parce qu’elle ne se recombine pas avec des séquences du chromosome X. Et donc comme le chromosome Y ne se transmet que de père en fils, la partie non recombinante de celui-ci est très pratique pour en déterminer une phylogénie à travers le monde et donc de retracer les lignées patrilinéaires afin de déterminer, par exemple, l’origine géographique de l’ancêtre masculin commun de l’ensemble des chromosomes Y (aussi appelé «Adam Chromosomique») actuels via les haplogroupes formés par ces derniers Pour le comprendre observons le schéma suivant.

Un ancêtre patrilinéaire commun nommé ici «Adam Chromosomique». Cet ancêtre patrilinéaire commun est donc porteur du dernier ancêtre commun des chromosomes Y. Cet «Adam Chromosomique» a eu deux fils qui perpétueront la lignée de leur chromosome Y respectif, chacun de leur côté. L’un des fils ou l’un de ses desendants, est porteur d’une mutation nommée «MBD» dont tous les descendant masculins seront donc à leur tour également porteurs. Ces derniers forment alors l’haplogroupe HBD. Les descendant du «fondateur» de l’haplogroupe HBD accumuleront également des mutations sur leur chromosome Y qui pourra donc être à l’origine de nouveaux haplogroupes, ici les haplogroupes HB et HCD, qui eux-mêmes pourront se subdiviser en d’autres haplogroupes et ainsi de suite. Notons que certains haplogroupes sont donc des sous-ensembles d’autres haplogroupes plus vaste, le tout formant un arbre phylogénétique selon une distribution hiérarchique. Nous noterons par exemple que les membres de l’haplogroupe HD, appartiennent à l’haplogroupe HCD qui comprend lui-même l’haplogroupe HC. Plus généralement les haplogroupes HB1, HB2, HC, HD1 et HD2 appartiennent tous à l’haplogroupe HBD.

Il est nécessaire cependant de bien se rappeler que les haplogroupes du chromosome Y ne nous renseignent pas sur l’ensemble des ascendances composant une population ou un individu. Par exemple l’haplogroupe de votre chromosome Y peut révéler que vous avez une ascendance Nord-Européenne alors que l’ADN mitochondriale ainsi qu’une partie non-négligeable de votre génome peut pointer vers une origine Est-Africaine. Néanmoins les haplogroupes du chromosome Y nous informent sur une partie des ascendances et en cela permet d’inférer sur certaines migrations ayant eu cours durant la préhistoire ou même durant les temps historiques.

Ainsi la phylogénie ainsi que la distribution des haplogroupes du chromosome Y à travers le monde peut nous renseigner sur certains mouvement de populations durant la préhistoire. En fait en effectuant une reconstruction cladistique des différents embranchements définis par les haplogroupes du chromosome Y, l’on peut même déterminer l’origine géographique probable de «l’Adam Chromosomique» de l’humanité. Pour mieux comprendre ce dernier point observons un arbre phylogénétique des haplogroupes du chromosome Y ainsi qu’une carte de la distribution de ces derniers à travers le monde.

En dessus l’arbre phylogénétique des haplogroupes en dessous leur distribution à travers le monde. L’embranchement de l’haplogroupe A est le plus basale et est présent essentiellement en Afrique. L’haplogroupe B est le deuxième plus base et s’enracine selon toute vraisemblance lui aussi en Afrique. Puis le digramme signale la mutation M168 à l’origine de tous les autres haplogroupes. L’haplogroupe E est un des haplogroupes les plus basaux de l’embranchement défini par la mutation M168, et il est présent de manière prépondérante en Afrique. Puis vient l’embranchement F lui aussi divisé en de multiples haplogroupes qui eux sont rares en Afrique mais distribués dans le reste du monde (diagramme tiré de P.A. Underhill (2003) [1].

Gardons en tête le diagramme et la carte présentés ci-dessus et ajoutons à ceux-ci le diagramme suivant.
Nous reconnaissons ci-dessus les divers haplogroupes du précédent diagramme et de la précédente carte avec cependant l’attribution de noms aux haplogroupes se subdivisant eux-mêmes en plusieurs sous-haplogroupes. Par exemple les haplogroupes G, I, J, L, T, H font tous partie de l’haplogroupe F qui lui-même est l’un des sous-ensembles de l’haplogroupe CT qui lui-même est un sous-ensemble de l’haplogroupe BT et ainsi de suite.

Nouveaux éléments sur les haplogroupes

Il faut toutefois noter que les cartes et diagrammes présentés ci-dessus sont des simplifications de la réalité. En effet généralement plusieurs mutations génétiques s’avèrent nécessaire pour définir un haplogroupe car on ne peut écarter le fait que des mutations ponctuelles se produisent plusieurs fois aux mêmes endroits et ainsi faussent les reconstructions cladistiques précédemment mentionnées. Aussi pour pallier à ce problème on identifie plusieurs mutations génétiques par haplogroupe. Par exemple l’Haplogroupe CT n’a pas été déterminé par la seule mutation M168, mais également par d’autres mutations tels que les dénommés P9.1 et M294. Voir TM. Karafet et al (2008) [2].

C’est d’ailleurs en prenant un nombre encore plus important de variations génétiques qu’une récente étude a permis de faire quelques corrections concernant l’arbre phylogénétique du chromosome Y. Cette étude a certes confirmé l’enracinement africain de l’arbre phylogénétique en question, elle a par exemple confirmé que l’existence et l’enracinement de l’haplogroupe BT (et probablement celui de l’haplogroupe CT qui est un sous-ensemble de l’haplogroupe BT) se trouve bel et bien en Afrique. Cependant l’étude en question a abouti à quelques corrections concernant l’haplogroupe A. En effet la dite étude réalisée par Fulvio Cruciani et al (2011) [3], montre que l’haplogroupe A défini par Karafet et al, est paraphylétique et donc n’existe pas vraiment sachant que certains embranchements de l’haplogroupe A sont en réalité davantage apparentés à l’haplogroupe B qu’à d’autres embranchement de l’haplogroupe A (voir image ci-dessous).

À droite l’arbre phylogénétique des haplogroupes du chromosome Y de TM. Karafet et al (2008). À gauche l’arbre phylogénétique du chromosome Y corrigé par F. Cruciani et al (2011). Nous noterons que hormis de changer la position phylogénétique de certains embranchements, cette étude donne une estimation plus ancienne du dernier ancêtre patrilinéaire commun (ou Adam Chromosomique). F. Cruciani et al estimant celui-ci a 140'000 ans. Cependant les premières sorties d’Afriques des chromosomes Y ancestraux, demeurent estimées à nettement moins de 100'000 ans, compatibles avec d’autres données, notamment l’ADN mitochondriale, pointant également vers une ou plusieurs sortie(s) du berceau africain, relativement récente(s).

Cette étude de F. Cruciani et al s’avère au final avoir deux implications importantes. La première étant l’âge attribué à «l’Adam Chromosomique». Alors que de précédentes études lui donnait un âge étonnamment récent (aux alentours de 60'000 ans), F. Cruciani et al l’estime à 140'000 ans! Cette plus grande ancienneté de l’Adam Chromosomique étant intéressante car davantage en concordance avec les données de l’ADN mitochondriale qui lui aussi se serait diversifié en Afrique entre 200'000 et 100'000 ans et lui aussi indiquant une sortie d’Afrique largement plus récente qu’il y a 100'000 ans [4]. Certes les estimations du dernier ancêtre patrilinéaire commun (données par le chromosome Y) n’a pas à concorder parfaitement avec celle du dernier ancêtre matrilinéaire commun (donné par l’ADN mitochondrial). Mais le fait est que les deux nous amènent à penser à une diversification initiale en Afrique de notre espèce suivie d’importantes vagues d’expansion hors d’Afrique relativement récentes. Et chose intéressante des analyses de séquences du génome à proprement parler, sont également en concordance avec ce scénario [5] [6].

Le deuxième point important de l’étude de F. Cruciani et al, est celui de l’enracinement géographique probable de l’arbre phylogénétique des haplogroupes du chromosome Y. En effet nous l’avons vu F. Cruciani et al ont corrigé le positionnement phylogénétique d’embranchements jusqu’alors considérés comme faisant partie d’un haplogroupe A monophylétique, et démontré que les dits embranchements étaient davantage apparenté à ceux de l’haplogroupe BT. Or chose intéressante les résultats de l’étude de F. Cruciani aboutissent à la mise en avant d’un embranchement basal (l’embranchement A1b du précédemment diagramme) montrant que l’origine géographique probable de l’Adam chromosomique ne serait pas à rechercher au Sud-Est de l’Afrique mais plutôt dans une étendue allant du Nord-Ouest de l’Afrique à l’Afrique centrale. Bien évidemment les auteurs restent prudents en raison des migrations qu’il y a pu y avoir au sein du continent africain durant la préhistoire.

Dans tous les cas il apparait très peu probable que l’Adam Chromosomique ait vécu ailleurs qu’en Afrique compte tenu du fait que les clades les plus basaux et de leur séparations les uns des autres pointent tous vers le continent africain.

Débats autour de l’origine géographique d’un haplogroupe

Nous l’avons vu «l’Adam Chromosomique» a selon toute vraisemblance vécu en Afrique. Cependant certains généticiens et paléoanthropologues ont à juste titre pensée que si d’importantes sorties d’Afrique de l’homme modernes s’étaient produites relativement récemment (c’est-à-dire nettement plus récentes que 100'000 ans), il est tout aussi possible qu’après être sorties d’Afrique certaine de ces populations humaines soient retourné sur le continent d’origine. C’est dans cette optique qu’un débat c’est ouvert sur l’origine géographique d’une mutation nommé YAP. Cette Mutation est l’une de celle définissant l’haplogroupe DE (voir diagramme ci-dessous) et il y eu plusieurs échanges de spécialistes pour savoir si cette mutation est apparu sur le continent Africain et a donc précédé l’expansion hors d’Afrique de l’ancêtre des chromosomes Y non-africains actuels. Ou si à l’inverse la dite mutation est apparu après une première sortie du continent africain puis se serait ensuite massivement répandu en Afrique suite à un retour en Afrique des populations porteuses de la mutation YAP.

Arbre phylogénétique des principaux haplogroupes du chromosome Y. L’haplogroupe DE comporte deux sous-ensemble, à savoir l’haplogroupe E principalement distribué en Afrique et l’Haplogroupe D principalement distribué en Eurasie.

À ce jour il n’existe pas de certitude sur cette question. Certains ont pensé que la mutation YAP devait être apparue hors d’Afrique car également associé à l’haplogroupe D dont l’origine et la localisation actuelle semblent clairement asiatique. De plus une étude initiale semblait indiquer que l’haplogroupe E fréquent en Asie, serait un sous-ensemble de l’haplogroupe D apparue en Asie et donc indiquerait d’importants retours en Afrique [7]. Cependant de nouvelles analyses montrèrent au final que l’haplogroupe E n’est pas un sous-ensemble de l’haplogroupe D. En réalité l’haplogroupe D et l’haplogroupe E forment tous deux l’haplogroupe DE qui est justement définit, entre autre, par la mutation YAP [8]. Cela remet donc en question l’origine asiatique de la mutation YAP. Et en donc en sachant que l’haplogroupe E qui lui est largement présent en Afrique (et très peu en Eurasie), n’est pas un sous-ensemble de l’haplogroupe D, cela signifie que le scénario le plus parcimonieux est celui d’une apparition de la mutation YAP en Afrique. D’autres éléments entourant la mutation YAP et l’haplogroupe DE ont continué d’alimenté le débat. Néanmoins aujourd’hui il apparait que le scénario le plus parcimonieux est que la mutation YAP ait eu lieu en Afrique et a donc précédé de peu la sortie d’Afrique ayant contribué à l’ensemble des haplogroupes du chromosome Y des populations non-africaines actuelles [9].

Carte de la distribution de l’haplogroupe E. On remarque que ce dernier est très fréquent sur quasiment tout le continent africain mais peu présent ailleurs.

En conclusion nous pouvons simplement dire qu’à ce jour le scénario le plus parcimonieux est que la mutation YAP soit apparu en Afrique. Mais donc dans l’hypothèse où celle-ci serait apparue en Asie il faudrait donc simplement en conclure que peu après une importante sortie d’Afrique certaines populations humaines sont retournées en Afrique. Car quelques soit l’origine de l’haplogroupe DE (définit par la mutation YAP), celui-ci est un sous-ensemble de l’haplogroupe CT qui est lui-même un sous-ensemble de l’haplogroupe BT s’enracinant clairement dans le continent africain. Mais donc le fait que les premières sorties d’Afrique ait été suivit de retour en Afrique (il y a probablement moins de 50'000 ans) est tout à fait plausible et même probable et cela même si la mutation YAP est apparu en Afrique, car tous les retours en Afrique même récents n’ont pas forcément laissé leur trace dans les haplogroupes du chromosome Y. Par ailleurs la présence de l'haplogroupe R à des fréquences relativement élevées dans certaines régions d'Afrique subsaharienne (notamment au Cameroun) témoigne probablement de migrations relativement récentes en provenance d'Eurasie dans ces régions. D’autres données issues de l’ensemble du génome sont nécessaires pour en savoir encore davantage sur ces retours en Afrique .

Conclusion:

Les haplogroupes du chromosome Y nous permettent de déterminer de manière assez fiables certaines ascendances des populations humaines actuelles et de ce fait représentent un indice précieux dans la détermination de l’origine géographique de notre espèce. Bien évidemment comme déjà dit au début de ce message, le chromosome Y ne peut nous donner qu’une vision très parcellaire des diverses ascendances des populations modernes. Nous l’avons vu dans deux messages précédents (ici et ici) que l’analyse du génome à proprement parler, nous montre une contribution génétique limité, mais non négligeables, d’ascendances Néanderthalienne pour l’ensemble des populations non-africaines [10] + quelques ascendances provenant d’une autre lignée d’hominidés archaïques pour les populations mélanésiennes [11] (et qui concernent peut-être même les populations Est-Asiatiques [12]).

Mais donc les haplogroupes du chromosome Y montrent clairement l’existence d’une ou plusieurs importante(s) sorties hors d’Afrique il y a moins de 100'000 ans (même largement moins que 100'000 ans). Et ces données fournies par les haplogroupes du chromosome Y concordent avec celles de l’ADN mitochondriale mais aussi celles du génome dans son ensemble. Tous pointant vers une importante expansion de l’homme moderne hors d’Afrique il y a moins de 100'000, tous relevant par ailleurs la très grande diversité génétique de l’Afrique subsaharienne par apport à celle du reste du monde, cette dernière étant pour l’essentiel qu’un sous-ensemble d’une diversité génétique essentiellement africaine.

Références:

[1] P.A. Underhill (2003), Inferring Human History: Clues from Y-Chromosome Haplotypes, Cold Spring Harbor Symposia on Quantitative Biology

[2] Tatiana M. Karafet et al (2008), New binary polymorphisms reshape and increase resolution of the human Y chromosomal haplogroup tree, Genome Resaerch

[3] Fulvio Cruciani et al (2011), A Revised Root for the Human Y Chromosomal Phylogenetic Tree: The Origin of Patrilineal Diversity in Africa, American Journal of Human Genetics

[4] Pedro Soares (2009), Correcting for Purifying Selection: An Improved Human Mitochondrial Molecular Clock, The American Society of Human Genetics

[5] Michael C. Campbell and Sarah A. Tishkoff (2008), African Genetic Diversity: Implications for Human Demographic History, Modern Human Origins, and Complex Disease Mapping, Annual Review of Genomics and Human Genetics

[6] Sarah A. Tishkoff and al (2009), The Genetic Structure and History of Africans and African Americans, Science

[7] M.F. Hammer et al (1997), The Geographic Distribution of Human Y Chromosome Variation, The Genetics Society of America

[8] P.A. Underhill et al (2001), The phylogeography of Y chromosome binary haplotypes and the origins of modern human populations, Annals of Human Genetics

[9] Peter A. Underhill and Toomas Kivisild (2007), Use of Y Chromosome and Mitochondrial DNA Population Structure in Tracing Human Migrations, Annual Review of Genetics

[10] Richard E. Green et al (2010), A Draft Sequence of the Neandertal Genome, Science

[11] David Reich et al (2010), Genetic history of an archaic hominin group from Denisova Cave in Siberia, Nature

[12] Pontus Skoglunda and Mattias Jakobssona (2011), Archaic human ancestry in East Asia, Proceedings of the National Academy of Sciences